Spletna revija za znanstvenike, strokovnjake
in nevroznanstvene navdušence
Naslovnica Članki Intervjuji Mnenja Zdravje Korenine eSinapsa Številke 
Leptin-endokanabinoidna os: molekularna povezava med energijskim ravnovesjem in uravnavanjem hranjenja
članki
eSinapsa, 2011-1
Zvezdan Pirtošek
Eksoskeleti – inteligentne bionske naprave
Marko Munih
O aktualnih dilemah draženja globokih možganskih struktur pri obsesivno - kompulzivni motnji
Nadja Jarc
Sledite svojo srečo ... z iPhone
Urban Kordeš
eSinapsa, 2011-2
Renata Salecl
Gašper Tkačik
Astrociti – spregledane zvezde nevrobiologije
Marko Kreft, Robert Zorec
Sašo Dolenc
Meditacija - malo truda, veliko koristi
Luka Dimic
eSinapsa, 2011-3
Mara Bresjanac
Martina Starc
Rok Berlot
Varnost uporabe generičnih protiepileptičnih zdravil
Mojca Kržan, Matevž Kržan
Možgani, računalniki - nekaj vmes
Miha Pelko
eSinapsa, 2012-4
Ali so moški in ženski možgani različni?
Gregor Majdič
O kognitivnih motnjah pri bolnikih s Parkinsonovo boleznijo
Dejan Georgiev
Akutno možgansko kap lahko uspešno zdravimo
Nina Vujasinovič, Bojana Žvan
Vloga nevropsihološke diagnostike pri odkrivanju zgodnjih znakov alzheimerjeve bolezni
Simon Brezovar
eSinapsa, 2013-5
Subarahnoidna krvavitev zaradi tromboze venskih sinusov
Mateja Repar, Anita Resman Gašperčič
Srečanje dveh velikanov: možganov in imunskega sistema
Matej Markota
Novo odkritje na področju sporadičnih prionskih bolezni
Jana Jerše, Nadja Jarc
Učinek placeba brez lažnih zdravil in zavajanja
Mara Bresjanac
eSinapsa, 2013-6
Odstranjevanje možganskih tumorjev pri budnem bolniku
Andrej Vranič, Jasmina Markovič, Blaž Koritnik
Zmedena bolnica, ki nič ne vidi ali PRES
Manja Hribar, Vid Zgonc
Manja Hribar
Sistemska skleroza in ishemična možganska kap - vzročna povezanost ali le koincidenca?
Mateja Repar, Janja Pretnar Oblak
Netravmatska lokalizirana konveksitetna subarahnoidna krvavitev
Mateja Repar, Fajko F. Bajrović
Klemen Grabljevec
Z omejevanjem spodbujajoča terapija pri bolnikih po nezgodni možganski poškodbi
Dejana Zajc, Klemen Grabljevec
eSinapsa, 2014-7
Možgani v mreži navezanosti, ki nas zaznamuje
Barbara Horvat
Vpliv senzoričnega dotoka na uglasitev možganskih povezav
Peter Gradišnik
Človeški konektom ali kakšne so zveze v naših možganih
Blaž Koritnik
Niko Lah
Torkove delavnice za osnovnošolce
Mateja Drolec Novak, Vid V. Vodušek
Da ne pozabim! Tehnike za pomladitev spomina
Klara Tostovršnik, Hana Hawlina
Površina socialne nevroznanosti
Manuel Kuran
Clarity - bistri možgani Karla Deisserotha
Gregor Belušič
Barbara Gnidovec Stražišar
Bojana Žvan
Nevroplastičnost po možganski kapi
Marjan Zaletel
Klinično psihološka obravnava pacientov po možganski kapi in podpora pri vračanju na delovno mesto
Barbara Starovasnik Žagavec
Možgani: organ, s katerim ljubimo
Andraž Matkovič
Marija Šoštarič Podlesnik
Gibalno-kognitivna vadba: praktična delavnica
Mitja Gerževič, Marina Dobnik
Anton Grad
Nevrologija, imunologija, psihiatrija …
Bojan Rojc
Andraž Stožer, Janez Bregant
Dominika Novak Pihler
Možganska kap – »kako ostati v omrežju?«
Nina Ozimic
Klara Tostovršnik
eSinapsa, 2014-8
Znotrajžilno zdravljenje možganskih anevrizem
Tamara Gorjanc, Dimitrij Lovrič
Obravnava hladnih možganskih anevrizem
Bojana Žvan, Janja Pretnar Oblak
Ali deklice z Rettovim sindromom govorijo z očmi?
Anka Slana, Urška Slana
Progresivna multifokalna encefalopatija
Urša Zabret, Katarina Šurlan Popovič
Ne ubijaj – poskusi na živalih
Martina Perše
Poizkusi na živalih - za in proti
Simon Horvat
eSinapsa, 2015-9
Kako deluje navigacijski sistem v naših možganih
Simon Brezovar
Vsakodnevno delo slepe osebe / s slepo osebo
Denis Kamnar
Uroš Marušič
Manca Tekavčič Pompe
Toni Pustovrh
Marko Hawlina
Od svetlobe do podobe ali kako vidijo svet naši možgani
Simon Brezovar
Janja Hrastovšek
Zala Kurinčič
Pogledi na mejno osebnostno motnjo
Jerica Radež, Peter Kapš
Uvid kot socialno psihološki fenomen
Vid Vodušek
Uvod v vidno-prostorske funkcije s praktičnimi primeri
Ana Bujišić, Sanja Roškar
eSinapsa, 2015-10
Difuzijsko magnetnoresonančno slikanje
Rok Berlot
Katja Pavšič
Radiološko izolirani sindrom - ali ga moramo poznati?
Matej Vouk, Katarina Šurlan Popovič
Kako izgledajo možgani, ki govorijo več jezikov?
Gašper Zupan
Nov pristop v rehabilitaciji - terapija s pomočjo psa
Mateja Drljepan
Pogled v maternico z magnetnoresonančno preiskavo
Taja Jordan, Tina Vipotnik Vesnaver
Saša Zorjan
Saša Zorjan
Nevroestetika: ko nevroznanost obišče galerijo
Anja Voljavec, Hana Hawlina, Nika Vrabič
Ali so psihogeni neepileptični napadi res psihogeni?
Saška Vipotnik, Gal Granda
Kako nam lahko glasna glasba »vzame« sluh in povzroči tinitus
Nejc Steiner, Saba Battelino
eSinapsa, 2016-11
Mara Bresjanac
Kako ultrazvok odpira pot v možgane
Kaja Kolmančič
Kako je epigenetika spremenila nevroznanost
Metka Ravnik Glavač
Ondinino prekletstvo ali sindrom prirojene centralne hipoventilacije
Katja Pavšič, Barbara Gnidovec Stražišar, Janja Pretnar Oblak, Fajko F. Bajrović
Zika virus in magnetnoresonančna diagnostika nepravilnosti osrednjega živčevja pri plodu
Rok Banko, Tina Vipotnik Vesnaver
Motnje ravnotežja otrok in odraslih
Nejc Steiner, Saba Battelino
eSinapsa, 2016-12
Vloga magnetnoresonančne spektroskopije pri obravnavi možganskih tumorjev
Gašper Zupan, Katarina Šurlan Popovič
Tiskanje tridimenzionalnih modelov v medicini
Andrej Vovk
Aleš Oblak
Kevin Klarič
Sinestezija: umetnica, ki ne želi odrasti
Tisa Frelih
Računska psihiatrija: od nevroznanosti do klinike
Nastja Tomat
Kognitivni nadzor: od vsakdanjega življenja do bolezni
Vida Ana Politakis
eSinapsa, 2017-13
Internet: nadgradnja ali nadomestek uma?
Matej Perovnik
Vloga črevesnega mikrobioma pri odzivu na stres
Vesna van Midden
Stres pušča posledice tako na človeškem kot živalskem organizmu
Jasmina Kerčmar
Prikaz normalne anatomije in bolezenskih stanj obraznega živca z magnetno resonanco
Rok Banko, Matej Vrabec
Psihedelična izkušnja in njen zdravilni potencial
Anja Cehnar, Jona Basle
Vpliv hiperglikemije na delovanje možganov
Jasna Šuput Omladič, Simona Klemenčič
Nevrofibromatoza: napredujoče obolenje centralnega in perifernega živčevja
Nejc Steiner, Saba Battelino
Fenomen žrtvenega jagnja v dobi interneta
Dolores Trol
Tesnoba staršev in strategije spoprijemanja, ko pri otroku na novo odkrijejo epilepsijo
Daša Kocjančič, Petra Lešnik Musek, Vesna Krkoč, David Gosar
eSinapsa, 2017-14
Zakaj ne zapeljem s ceste, ko kihnem?
Anka Slana Ozimič, Grega Repovš
Nobelova nagrada za odkritje molekularnih mehanizmov nadzora cirkadianih ritmov
Leja Dolenc Grošelj
Možgani pod stresom: od celic do duševnih motenj
Nastja Tomat
Na sledi prvi vzročni terapiji Huntingtonove bolezni
Danaja Metul
Razlike med spoloma pri Parkinsonovi bolezni
Kaja Kolmančič
eSinapsa, 2018-15
Susceptibilno poudarjeno magnetnoresonančno slikanje pri bolniku z ALS
Alja Vičič, Jernej Avsenik, Rok Berlot
Sara Fabjan
Reverzibilni cerebralni vazokonstrikcijski sindrom – pot do diagnoze
Maja Cimperšek, Katarina Šurlan Popovič
Liam Korošec Hudnik
Kognitivno funkcioniranje pri izgorelosti
Marina Horvat
eSinapsa, 2019-16
Maša Čater
Saša Koprivec
Infekcije osrednjega živčnega sistema s flavivirusi
Maja Potokar
Raziskava: Kako depresija vpliva na kognitivne sposobnosti?
Vida Ana Politakis
Razvoj depresije pri otrocih z vidika navezovalnega vedenja
Neža Grgurevič
Sonja Prpar Mihevc
Umetno inteligentna nevroznanost: srečanje nevronskih mrež in možganske fiziologije
Kristijan Armeni
Čebelji strup pri preventivi nevrodegenerativnih bolezni in priložnost za klinično prakso
Matjaž Deželak
eSinapsa, 2019-17
IgG4+ – skupni imenovalec diagnoz iz preteklosti
Cene Jerele, Katarina Šurlan Popovič
Nov molekulski mehanizem delovanja ketamina v astrocitih
Matjaž Stenovec
Praktični pristop k obravnavi utrujenosti in motenj spanja pri bolnikih z multiplo sklerozo
Nik Krajnc, Leja Dolenc Grošelj
Jure Pešak
eSinapsa, 2020-18
Bolezni spektra anti-MOG pri odraslih
Nik Krajnc
Samomor pod lupo nevroznanosti
Alina Holnthaner
eSinapsa, 2020-19
Ob mednarodnem dnevu znakovnih jezikov
Anka Slana Ozimič
Teorija obetov: kako sprejemamo tvegane odločitve
Nastja Tomat
Sara Fabjan
Matjaž Deželak
Nina Stanojević, Uroš Kovačič
Od človeških nevronov do možganskih organoidov – nova obzorja v nevroznanosti
Vesna M. van Midden
Splošna umetna inteligenca ali statistične jezikovne papige?
Kristijan Armeni
Zunajcelični vezikli kot prenašalci zdravilnih učinkovin preko krvno-možganske prepreke
Saša Koprivec
Matjaž Deželak
eSinapsa, 2021-20
Migrena: starodavna bolezen, sodobni pristopi k zdravljenju
Eva Koban, Lina Savšek
Zgodnji razvoj socialnega vedenja
Vesna Jug
Nastja Tomat
Mikrosplet: povezovanje preko mikrobioma
Tina Tinkara Peternelj
Stimulacija možganov kot način zdravljenja depresije
Saša Kocijančič Azzaoui
eSinapsa, 2021-21
eSinapsa, 2022-22
Sodobni vidiki motenj hranjenja
Karin Sernec
Ples in gibalni dialog z malčki
Neva Kralj
Atul Gawande
Jezikovna funkcija pri Alzheimerjevi bolezni
Gašper Tonin
Dostava terapevtikov preko krvno-možganske pregrade
Matjaž Deželak
eSinapsa, 2022-23
Akutni ishemični infarkt hrbtenjače pri zdravih otrocih – kaj lahko pove radiolog?
Katarina Šurlan Popovič, Barbara Šijaković
eSinapsa, 2023-24
Možganska omrežja pri nevrodegenerativnih boleznih
Tomaž Rus, Matej Perovnik
Morske živali kot navdih za nevroznanstvenike: morski konjiček, morski zajček in klobučnjak
Tina Bregant
Metoda Feldenkrais: gibanje in nevroplastičnost
Mateja Pate
Etično naravnana animalna nevroznanost
Maša Čater
Helena Motaln, Boris Rogelj
eSinapsa, 2023-25
Urban Košak, Damijan Knez, Anže Meden, Simon Žakelj, Jurij Trontelj, Jure Stojan, Maja Zakošek Pipan, Kinga Sałat idr.
eSinapsa, 2024-26
Naravno okolje kot vir zdravja in blagostanja
Karin Križman, Grega Repovš, Gaja Zager Kocjan, Gregor Geršak
Katja Peganc Nunčič, Damjan Osredkar
Tanja Goltnik
Ali je zgodnje vstajanje dedno?
Cene Skubic, Laura Plavc, Damjana Rozman, Leja Dolenc Grošelj
eSinapsa, 2024-27
Širša terapevtska uporaba ketamina: potenciali in izzivi
Kristian Elersič
Moč vpliva socialne opore na bolečino
Jana Verdnik
Benjamin Bušelič
Urška Černe, Anemari Horvat, Robert Zorec, Nina Vardjan
eSinapsa, 2025-28
Maša Čater, Nastja Blagovič, Urška Jerič, Agata Kokalj Malovrh, Nuša Balen, Tanja Kunej
Vpliv izobrazbe na skrb za zdravje možganov
Hana Kos, Matej Perovnik
Selena Horvat, Anja Pišlar
eSinapsa, 2025-29
Knjiga Kje so moji ključi kot primer narativne medicine
Zdenka Čebašek-Travnik, Saša Novak
Vpliv anestetikov na oksidativni stres
Katerina Tomsič, Alenka Nemec Svete
Rak, živčni in imunski sistem – kako so med seboj povezani?
Maja Čemažar, Tanja Jesenko, Urša Lampreht Tratar, Maša Omerzel
eSinapsa, 2026-30
Denis Štepihar, Klementina Fon Tacer
Marta Macedoni Lukšič
eSinapsa, 2026-31
Timur Mušić, Jan Rožanc, Tamara Lah Turnšek
Zakaj jemo, ko smo lačni – in zakaj včasih tudi takrat, ko nismo? Prehranjevanje uravnava zapletena mreža molekularnih signalov iz prebavil, maščevja in možganov. Med njimi imata pomembno vlogo leptin, ki možganom posreduje informacijo o dolgoročnih energijskih zalogah prek leptinskega receptorja, in na drugi strani grelin, ki se pretežno izloča v želodcu in spodbuja lakoto. Oba sta v neposredni ali posredni interakciji z endokanabinoidnim sistemom (ECS), ki v določenih vrstah nevronov sodeluje pri uravnavanju lakote, motivacije in nagrajevanja. Kako sta leptinski in endokanabinoidni sistem povezana in kaj to pomeni za zdravljenje motenj hranjenja in energijske homeostaze?
Od presnove do možganov: kdo odloča, kdaj jemo?
Prehranjevanje se na prvi pogled zdi preprosto vedenje: ko smo lačni, jemo, ko smo siti, prenehamo. V resnici je odločitev za obrok rezultat nenehne integracije številnih centralnih in perifernih signalov, ki možganom sporočajo, koliko energije je organizmu na voljo, kakšne so njegove trenutne potrebe in kakšne so pričakovane posledice zaužitja hrane. Pri tem sodelujejo hipotalamus, možgansko deblo, limbični sistem in posamezni predeli možganske skorje ter številni hormonski in nevrotransmiterski sistemi.12 Pomemben del teh informacij izvira neposredno iz prebavil. Pred obrokom ima pomembno vlogo grelin, hormon, ki se pretežno izloča v želodcu in spodbuja lakoto ter vnos hrane. Po začetku obroka pa se vključijo signali, ki prispevajo k zaviranju njegovega izločanja. Raztezanje želodca aktivira mehanoreceptorje, katerih signali se po vagalnih aferentnih poteh prenašajo v možgansko deblo in prispevajo k občutku sitosti. Temu se pridružijo še drugi hormonski signali iz prebavil, med drugim holecistokinin (CCK), glukagonu podoben peptid-1 (GLP-1) in peptid YY (PYY), ki sodelujejo pri uravnavanju sitosti in vnosa hrane.23
Ti kratkoročni signali se nato povezujejo z informacijami o določenem energijskem stanju organizma. Med najpomembnejšimi je leptin, hormon, ki ga izloča predvsem maščobno tkivo in možganom posreduje informacijo o energijskih zalogah organizma ter sodeluje pri usklajevanju vnosa hrane z energijsko porabo. Leptin v hipotalamusu spodbuja aktivnost anoreksigenih poti, zlasti nevronov, ki izražajo proopiomelanokortin (POMC), ter zavira oreksigene poti, povezane predvsem z nevroni, ki izražajo nevropeptid Y (NPY) in agutiju sorodni protein (AgRP).4 Uravnavanje hranjenja pa ni omejeno le na hipotalamus. Informacije o energijskem stanju se vključujejo v širše možganske mreže, ki povezujejo homeostatsko regulacijo z motivacijo in nagrajevanjem. Pri tem imajo pomembno vlogo limbične strukture, vključno z mezolimbičnim dopaminskim sistemom, ki sodeluje pri motivaciji za hranjenje.5 Odločitev za hranjenje se tako oblikuje na presečišču dveh vprašanj: »Ali potrebujem energijo?« in »Kako močno me hrana motivira?« Odgovor torej povezuje homeostatsko uravnavanje prehranskih potreb na eni strani s težnjo po užitku oziroma hedonskim vidikom hranjenja na drugi. Prav na tem stičišču postane posebej zanimiv endokanabinoidni sistem (ECS). Njegovo delovanje ni omejeno zgolj na uravnavanje vnosa hrane, temveč vključuje tudi vplive na hipotalamične in limbične nevronske mreže, povezane z regulacijo hranjenja.6 To odpira vprašanje, ali lahko ECS sodeluje pri povezovanju signalov o energijskem stanju z motivacijskimi vidiki hranjenja in odzivom prebavil. V prispevku osvetljujemo predvsem medsebojno delovanje leptinskega in endokanabinoidnega sistema ter njegovo morebitno vlogo pri motnjah hranjenja in energijske homeostaze.
Endokanabinoidni sistem: med lakoto in nagrajevanjem?
ECS je široko razširjen regulatorni sistem, ki ga sestavljajo endogeni kanabinoidi, kanabinoidni receptorji ter encimi, vključeni v njihovo sintezo in razgradnjo. Med glavna endokanabinoida sodita anandamid (AEA) in 2-arahidonoilglicerol (2-AG), med najbolje opredeljena kanabinoidna receptorja pa receptorja tipa 1 (CB1) in 2 (CB2). 7 ECS je prisoten v številnih tkivih, vključno z osrednjim živčevjem, imunskim sistemom in maščevjem. Pri uravnavanju hranjenja je v osrednjem živčnem sistemu pomemben CB1, katerega aktivacija vpliva na hipotalamične mehanizme vnosa hrane in nevronske signalne poti, povezane z motivacijo in nagrajevanjem. 8 8 Zaradi vpletenosti v presnovne procese in vedenje, vezano na vnos hrane, ECS predstavlja zanimiv sistem pri raziskovanju motenj energijske homeostaze. Novejša raziskava pri miših je pokazala, da ECS sodeluje pri uravnavanju motivacije, še zlasti v možganskih predelih, povezanih z nagrajevanjem. 9
Obenem je pomemben tudi periferni ECS, na katerega lažje vplivamo pri uravnavanju debelosti. Receptor CB1 v perifernih tkivih, denimo v prebavilih, jetrih in maščevju, sodeluje pri uravnavanju presnove in apetita, na perifernih živčnih končičih pa tudi pri zaznavanju bolečine. 9 Njegovo periferno zaviranje ne povzroča izrazitih psihotropnih učinkov, zato je periferni ECS zanimiva tarča za raziskovanje novih pristopov k zdravljenju debelosti in z njo povezanih presnovnih motenj.10 V mišjih modelih debelosti so periferno omejeni sintetični inverzni agonisti receptorja CB1, kot je JD5037, zmanjšali hiperleptinemijo in izboljšali občutljivost za leptin.11 Ti predklinični rezultati kažejo na potencial perifernega zaviranja CB1, vendar je treba njegovo terapevtsko učinkovitost in varnost pri ljudeh še potrditi. 12
Leptin in endokanabinoidi: dvosmerno signaliziranje
Leptinsko in endokanabinoidno signaliziranje nista neodvisna regulatorna sistema. Že zgodnje raziskave so pokazale, da je pomanjkanje leptinskega signaliziranja povezano s povišanimi ravnmi endokanabinoidov v hipotalamusu, medtem ko lahko leptin zmanjša koncentracije AEA in 2-AG. 13 Leptin pri tem ne vpliva le na količino endokanabinoidov, temveč tudi na njihovo presnovo. Pomemben člen tega procesa je amidna hidrolaza maščobnih kislin (FAAH), encim, ki sodeluje pri razgradnji AEA. Eksperimentalni podatki pri miših kažejo, da leptin spodbuja izražanje oziroma aktivnost FAAH v možganskih predelih, povezanih z uravnavanjem hranjenja, s čimer lahko zmanjša razpoložljivost AEA. 14 14 To nakazuje, da komunikacija med leptinom in ECS ne poteka le na ravni receptorjev, temveč vključuje tudi uravnavanje presnove endokanabinoidov.
Komunikacija med sistemoma poteka tudi v nasprotni smeri: eksperimentalni podatki iz celičnih in mišjih modelov kažejo, da lahko aktivacija CB1 oslabi z leptinom spodbujeno signalno pot JAK2–STAT3 (Janusova proteinska tirozin kinaza 2-signalni pretvornik in aktivator transkripcije 3), eno ključnih znotrajceličnih poti leptinskega receptorja. Pri tem sodelujeta β-arrestin 1 in fosfataza TC-PTP (proteinska tirozinska fosfataza celic T), ki prispevata k zmanjšani aktivaciji STAT3. 15 Raziskave specifičnih hipotalamičnih nevronskih populacij pri miših dodatno podpirajo vlogo CB1 pri presnovnih odzivih, povezanih z leptinom. 16 Ti podatki govorijo v prid dvosmerni komunikaciji med leptinskim sistemom in ECS. Pomembno pa je, da večina neposrednih mehanističnih dokazov za to komunikacijo izhaja iz celičnih in živalskih modelov, medtem ko je njen fiziološki in klinični pomen pri človeku bistveno manj raziskan (Slika 1).
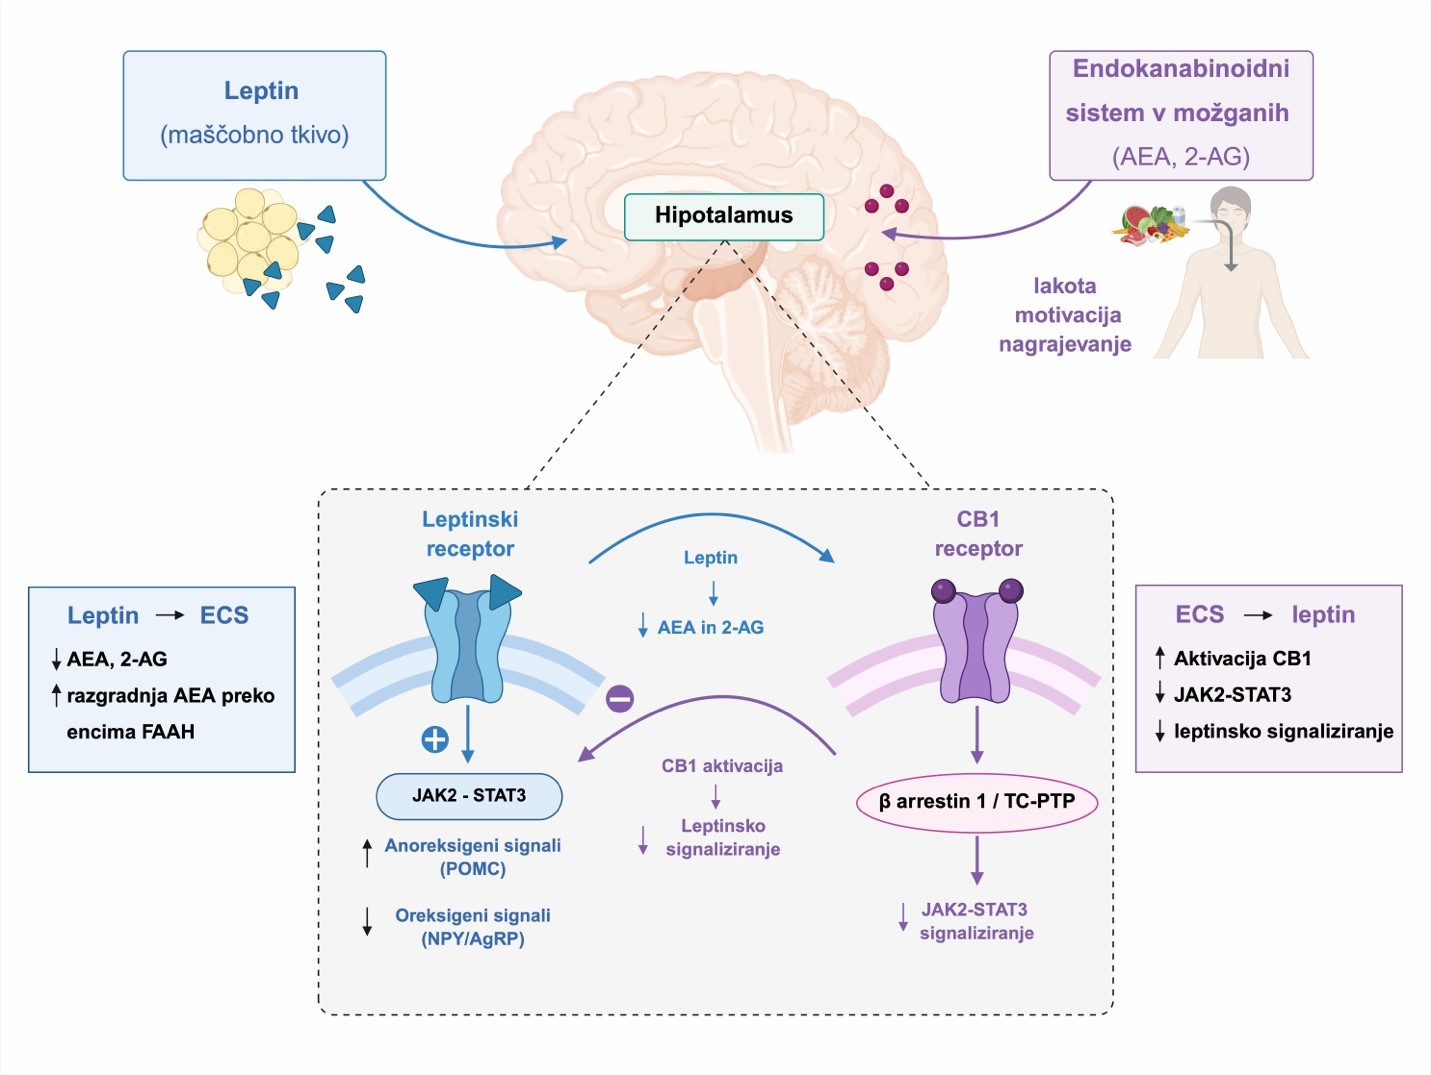
Slika 1. Medsebojno delovanje leptina in endokanabinoidnega sistema med uravnavanjem hranjenja. Leptin iz maščobnega tkiva in endokanabinoidni sistem v možganih sodelujeta pri uravnavanju energijskega ravnovesja, lakote in nagrajevanja. Leptinsko signaliziranje prek receptorja za leptin in aktivacije signalne poti JAK2–STAT3 zmanjšuje raven endokanabinoidov AEA in 2-AG, spodbuja anoreksigene in zavira oreksigene signale. Po drugi strani aktivacija receptorja CB1 zavira leptinsko signaliziranje prek β-arrestina 1 in TC-PTP ter tako predstavlja ključni mehanizem povezovanja obeh sistemov. Kratice: AEA – anandamid; 2-AG – 2-arahidonoilglicerol; CB1 – kanabinoidni receptor tipa 1; ECS – endokanabinoidni sistem; FAAH – amidna hidrolaza maščobnih kislin; JAK2–STAT3 – Janus kinaza 2 – signalni pretvornik in aktivator transkripcije 3; POMC – proopiomelanokortin; NPY – nevropeptid Y; AgRP – agutiju sorodni protein; TC-PTP – proteinska tirozinska fosfataza celic T. Konceptualno povzeto po Szanda in sod. (2023).
Leptinsko-endokanabinoidna os: od signaliziranja do motenj hranjenja in energijske homeostaze
Pri motnjah hranjenja je povezava med leptinskim in endokanabinoidnim signaliziranjem bistveno bolj zapletena kot v eksperimentalnih modelih. Pri anoreksiji nervozi so zaradi zmanjšane maščobne mase ravni leptina pogosto nizke (hipoleptinemija), vendar iz tega ni mogoče neposredno sklepati, da povečana aktivnost ECS povzroča ali kompenzira vedenjske značilnosti bolezni. Pri nekaterih bolnicah z anoreksijo nervozo in pri osebah z motnjo prenajedanja so bile ugotovljene povišane ravni AEA, toda rezultati med raziskavami niso povsem enotni. 17 18 Ključno vprašanje ostaja odprto: ali spremembe leptina in endokanabinoidov sodelujejo pri nastanku in vzdrževanju motenj hranjenja ali pa so te le posledica stradanja, zmanjšane maščobne mase, trajanja bolezni oziroma ponovne vzpostavitve prehranjevanja (realimentacije). Anoreksija nervoza, bulimija nervoza in motnja prenajedanja so zato različna klinična in presnovna stanja, pri katerih ni smiselno predpostavljati enotnega vzorca leptinskega in endoknabinoidnega signaliziranja. Spremembe ECS so bile opisane tudi pri drugih nevropsihiatričnih motnjah, kar podpira njegovo širšo vlogo pri uravnavanju motivacijskih, čustvenih in vedenjskih procesov. 18
Debelost ni motnja hranjenja v enakem kliničnem pomenu kot anoreksija ali bulimija nervoza, temveč presnovna motnja energijske homeostaze, zato jo obravnavamo ločeno. Zanjo je značilna predvsem leptinska rezistenca, pri kateri je kljub povišanim koncentracijam leptina njegov učinek na tarčne nevronske mreže oslabljen, mehanizmi pa še niso popolnoma razjasnjeni. 19 Tudi tu ostaja odprto vprašanje vzročnosti: spremenjeno endokanabinoidno signaliziranje lahko prispeva k leptinski rezistenci, lahko pa se deloma razvije sekundarno zaradi kroničnega energijskega presežka. Komunikacija med leptinom in ECS zato predstavlja pomemben mehanistični okvir motenj hranjenja in energijske homeostaze ter odpira nova vprašanja o možnostih njihovega ciljnega uravnavanja.
Od mehanizma do terapevtskih možnosti
Današnje razumevanje kaže, da zdravljenje motenj hranjenja ne sme biti usmerjeno zgolj v spremembo telesne mase, ampak tudi v ponovno vzpostavljanje ustreznega ravnovesja med presnovnimi in nevronskimi sistemi, ki uravnavajo lakoto, sitost in nagrajevanje. Ena izmed eksperimentalnih raziskovalnih smeri je nadomeščanje leptina z rekombinantnim humanim leptinom (metreleptinom). V prvih manjših kliničnih raziskavah so poleg presnovnih učinkov opazili tudi zmanjšanje depresivnosti, tesnobe in obsesivnih misli o hrani ter izboljšanje motivacije za zdravljenje. 18 Ti zgodnji rezultati so spodbudili nadaljnje klinično raziskovanje tega pristopa. Trenutno poteka randomizirana dvojno slepa klinična raziskava METRAN, ki preverja njegovo učinkovitost pri hospitaliziranih bolnikih z anoreksijo nervozo. 19
Druga zanimiva raziskovalna smer vključuje fitokanabinoide, predvsem THC in CBD. THC je agonist receptorja CB1, ki lahko poveča apetit in olajša pridobivanje telesne mase, 20 vendar neželeni psihoaktivni učinki ter spremenljiv odziv omejujejo njegovo uporabo pri motnjah hranjenja. Nasprotni pristop predstavlja blokada CB1. Rimonabant, centralno delujoči antagonist oziroma inverzni agonist CB1, je pri debelosti zmanjšal telesno maso in izboljšal nekatere presnovne kazalnike, vendar je bila njegova uporaba povezana s pomisleki glede psihiatričnih neželenih učinkov, zaradi katerih je bil umaknjen s trga. 21 Novejša ponovna analiza kliničnih in regulatornih podatkov je izrazila dvome o takratni oceni specifičnega tveganja za samomorilnost, vendar to ne spremeni regulatorne ugotovitve, da koristi zdravila zaradi pomembnih psihiatričnih neželenih učinkov niso odtehtale tveganj. 22 Ta izkušnja je kljub temu odločilno usmerila razvoj nove generacije CB1-modulatorjev k bolj selektivnim in periferno omejenim pristopom, ki le minimalno prehajajo v možgane.
V predkliničnih modelih debelosti je periferno zaviranje CB1 zmanjšalo hiperleptinemijo in ponovno povečalo občutljivost za leptin, raziskave pa so pokazale tudi obnovitev leptinskega signaliziranja v hipotalamusu. 23 24 Takšni rezultati odpirajo možnost, da bi presnovne učinke uravnavanja ECS dosegli ob manjšem vplivu na centralne funkcije CB1, in zato predstavljajo zanimivo smer nadaljnjega razvoja.
Drugačen pristop predstavlja manj psihoaktivni CBD, ki ima kompleksnejši farmakološki profil. Eksperimentalne raziskave kažejo, da se lahko ta veže na bolj ali manj selektivne receptorske tarče, kot je CB1, kjer deluje kot negativni alosterični modulator CB1, kar pomeni, da lahko zmanjša odziv receptorja na nekatere agoniste, ne da bi se vezal na isto vezavno mesto. 25 Rezultati nedavne pilotne randomizirane dvojno slepe raziskave pri odraslih ženskah z anoreksijo nervozo (16 udeleženk v skupini s CBD in 16 v skupini s placebom, 21 dni) kažejo na majhno, a statistično značilno povečanje indeksa telesne mase, medtem ko drugi klinični izidi niso dosegli statistične značilnosti. V raziskavi niso ugotovili pomembnih varnostnih tveganj, vendar majhen vzorec in kratko spremljanje omejujeta oceno varnosti.26 Rezultate je treba razlagati previdno in jih potrditi v večjih kliničnih študijah. Obe strategiji sta zanimivi smeri nadaljnjega razvoja, pri čemer bi morebitni farmakološki pristopi dopolnjevali obstoječo psihoterapevtsko in prehransko obravnavo.
Povzetek in zaključek
Leptin, grelin in ECS povezujejo energijsko stanje telesa z uravnavanjem lakote, sitosti in nagrajevalnega učinka hrane. Hipotalamus usklajuje oreksigene in anoreksigene signale, pri čemer leptin iz maščobnega tkiva posreduje informacije o zadostnem stanju energijskih zalog, medtem ko grelin, pretežno želodčnega izvora, signalizira pomanjkanje energije in spodbuja lakoto. V tem kontekstu ima ECS pomemben vpliv na motivacijo in nagrajevalni vidik hranjenja. Endokanabinoida 2-AG in AEA prek receptorja CB1 sodelujeta pri uravnavanju teh procesov, pri čemer se njuno delovanje prepleta tudi z leptinskim signaliziranjem. Motnje medsebojnega delovanja najdemo tako pri motnjah hranjenja (anoreksiji nervozi, bulimiji nervozi) kot pri motnjah energijske homeostaze (npr. debelosti). Medsebojni vpliv leptina in ECS predstavlja jedro integracije homeostatskega in hedonskega nadzora prehranjevanja. Ta novi pogled in razumevanje leptinsko-endokanabinoidne komunikacije na celični ravni odpirata nove terapevtske možnosti. Leptinski analogi ter selektivnejši modulatorji receptorja CB1 so zato zanimive raziskovalne možnosti, katerih učinkovitost in varnost bo treba potrditi v ustrezno zasnovanih kliničnih raziskavah.
-
___
-
Chambers AP, Sandoval DA, Seeley RJ. Integration of satiety signals by the central nervous system. Curr Biol. 2013; 23(9): R379–R388. doi:10.1016/j.cub.2013.03.020 ↩
-
Chaudhri OB, Salem V, Murphy KG, Bloom SR. Gastrointestinal satiety signals. Annu Rev Physiol. 2008; 70: 239–255. doi:10.1146/annurev.physiol.70.113006.100506 ↩
-
Steinert RE, Feinle-Bisset C, Asarian L, Horowitz M, Beglinger C, Geary N. Ghrelin, CCK, GLP-1, and PYY(3-36): Secretory Controls and Physiological Roles in Eating and Glycemia in Health, Obesity, and After RYGB. Physiol Rev. 2017; 97(1): 411–463. doi:10.1152/physrev.00031.2014 ↩
-
Farr OM, Li CR, Mantzoros CS. Central nervous system regulation of eating: Insights from human brain imaging. Metabolism. 2016; 65(5): 699–713. doi:10.1016/j.metabol.2016.02.002 ↩
-
Joshi N, Onaivi ES. Endocannabinoid System Components: Overview and Tissue Distribution. Adv Exp Med Biol. 2019; 1162: 1–12. doi:10.1007/978-3-030-21737-2_1 ↩
-
Jung KM, Lin L, Piomelli D. The endocannabinoid system in the adipose organ. Rev Endocr Metab Disord. 2022; 23(1): 51–60. doi:10.1007/s11154-020-09623-z ↩
-
Lowe H, Toyang N, Steele B, Bryant J, Ngwa W. The Endocannabinoid System: A Potential Target for the Treatment of Various Diseases. Int J Mol Sci. 2021; 22(17): 9472. doi:10.3390/ijms22179472 ↩
-
Marcus DJ, English AE, Chun G, et al. Endocannabinoids facilitate reward engagement through retrograde gain control. Nature. 2026. doi:10.1038/s41586-026-10967-w ↩
-
Ruben NC, Veyrat-Durebex, et al.Peripheral, but not central, CB11 antagonism provides food intake–independent metabolic benefits in diet-induced obese rats. Diabetes 2008; 57 (11): 2977–299 /doi.org/10.2337/db08-0161 ↩
-
Tam J, Cinar R, Liu J, et al. Peripheral cannabinoid-1 receptor inverse agonism reduces obesity by reversing leptin resistance. Cell Metab. 2012; 16(2): 167–179. doi.org/10.1016/j.cmet.2012.07.002 ↩
-
Talebloo J, Chawla E, Shahamati D, Shiv S, Gadde KM. Peripheral cannabinoid-1 receptor antagonists in clinical development: therapeutic potential for the management of obesity and related metabolic disorders. Expert Opin Investig Drugs. 2026 Jul-Aug;35(8):555-564. doi: 10.1080/13543784.2026.2713043. ↩
-
Di Marzo V, Goparaju SK, Wang L, et al. Leptin-regulated endocannabinoids are involved in maintaining food intake. Nature. 2001; 410(6830): 822–825. doi:10.1038/35071088 ↩
-
Balsevich G, Sticht M, Bowles NP, et al. Role for fatty acid amide hydrolase (FAAH) in the leptin-mediated effects on feeding and energy balance. Proc Natl Acad Sci U S A. 2018; 115(29): 7605–7610. doi:10.1073/pnas.1802251115 ↩
-
Szanda G, Jourdan T, Wisniewski É, et al. Cannabinoid receptor type 1 (CB1R) inhibits hypothalamic leptin signaling via β-arrestin1 in complex with TC-PTP and STAT3. iScience. 2023; 26(7): 107207. doi:10.1016/j.isci.2023.107207 ↩
-
Cardinal P, André C, Quarta C, et al. CB1 cannabinoid receptor in SF1-expressing neurons of the ventromedial hypothalamus determines metabolic responses to diet and leptin. Mol Metab. 2014; 3(7): 705–716. doi:10.1016/j.molmet.2014.07.004 ↩
-
Monteleone P, Matias I, Martiadis V, De Petrocellis L, Maj M, Di Marzo V. Blood levels of the endocannabinoid anandamide are increased in anorexia nervosa and in binge-eating disorder, but not in bulimia nervosa. Neuropsychopharmacology. 2005; 30(6): 1216–1221. doi:10.1038/sj.npp.1300695 ↩
-
Mušić T, Turnšek TL. The Endocannabinoid System in Neuropsychiatric Disorders: Mechanisms, Dysregulation and Therapeutic Potential. Biomedicines. 2026; 14(5): 968. doi:10.3390/biomedicines14050968 ↩
-
Obradovic M, Sudar-Milovanovic E, Soskic S, et al. Leptin and Obesity: Role and Clinical Implication. Front Endocrinol (Lausanne). 2021; 12: 585887. doi:10.3389/fendo.2021.585887 ↩
-
Milos G, Antel J, Kaufmann LK, et al. Short-term metreleptin treatment of patients with anorexia nervosa: rapid on-set of beneficial cognitive, emotional, and behavioral effects. Transl Psychiatry. 2020; 10(1): 303. doi:10.1038/s41398-020-00977-1 ↩
-
ClinicalTrials.gov. Metreleptin in anorexia nervosa. ClinicalTrials.gov identifier NCT06305182. Updated 2026. Accessed September 6, 2026. https://clinicaltrials.gov/study/NCT06305182 ↩
-
Kirkham TC. Cannabinoids and appetite: food craving and food pleasure. Int Rev Psychiatry. 2009; 21(2): 163–171. doi:10.1080/09540260902782810 ↩
-
Christensen R, Kristensen PK, Bartels EM, Bliddal H, Astrup A. Efficacy and safety of the weight-loss drug rimonabant: a meta-analysis of randomized trials. Lancet. 2007; 370(9600): 1706–1713. doi:10.1016/S0140-6736(07)61721-8 ↩
-
Cohen Y, Kolodziej A, Morningstar M. Seventeen years since rimonabant’s downfall: reassessing its suicidality risk profile. Obesity (Silver Spring). 2024; 32(7): 1235–1244. doi:10.1002/oby.24019 ↩
-
Laprairie RB, Bagher AM, Kelly ME, Denovan-Wright EM. Cannabidiol is a negative allosteric modulator of the cannabinoid CB1 receptor. Br J Pharmacol. 2015; 172(20): 4790–4805. doi:10.1111/bph.13250 ↩
-
Sahota N, Grelotti DJ, Nguyen T, et al. Cannabidiol in Anorexia Nervosa: A Double-Blind Randomized Placebo Controlled Pilot Study to Test Safety, Pharmacokinetics, and Symptom Change. Int J Eat Disord. 2026; 59(7): 1576–1587. doi:10.1002/eat.70034 ↩
Timur Mušić, dr. med.
Inštitut za fiziologijo, Center za fiziologijo in farmakologijo, Medicinska univerza na Dunaju
Doc. dr. Jan Rožanc
Inštitut za biomedicinske vede, Medicinska fakulteta, Univerza v Mariboru
in
EndoVia Therapeutics d.o.o., Maribor
Zasl. prof. dr. Tamara Lah Turnšek
Nacionalni inštitut za biologijo, Oddelek za genetsko toksikologijo in biologijo raka